Regulação da expressão gênica
A regulação da expressão gênica é o processo fundamental pelo qual as células controlam quais genes são ativados, em que quantidade e em que momento. Isso permite que a informação codificada no DNA seja convertida em produtos gênicos (como RNAs ou proteínas) que desempenham funções específicas, garantindo o controle da estrutura e função celular. É a base da diferenciação celular, morfogênese e adaptabilidade dos organismos.
Pontos-chave
- A regulação gênica controla a ativação e desativação de genes e a quantidade de produtos gênicos.
- Pode ocorrer em diversas etapas, desde a transcrição do DNA até a modificação pós-traducional de proteínas.
- Em eucariotos, a estrutura da cromatina e modificações epigenéticas são cruciais para a regulação.
- Bactérias regulam a expressão gênica para otimizar o uso de nutrientes e conservar energia.
- Mecanismos regulatórios envolvem proteínas ativadoras e repressoras que interagem com o DNA.
Em organismos eucariotos, a forma como o DNA está empacotado na cromatina influencia diretamente a acessibilidade dos genes. Modificações em histonas e metilação do DNA podem alterar essa estrutura, aumentando ou diminuindo a expressão gênica. Essas alterações, quando herdáveis, são chamadas de regulação epigenética.
Estrutura da Cromatina e Transcrição
A transcrição do DNA é influenciada pela sua estrutura. A densidade do empacotamento do DNA em nucleossomos (complexos de proteínas octaméricas) indica a frequência de transcrição. Modificações temporárias (como fosforilação) ou permanentes (como metilação) nos nucleossomos podem alterar os níveis de expressão gênica. Embora produtos gênicos possam ser RNA ou proteína, a maioria dos mecanismos conhecidos regula genes produtores de proteínas. A regulação pode ocorrer em qualquer etapa, desde a transcrição até a modificação pós-traducional, conferindo à célula controle sobre sua estrutura e função, e sendo essencial para a diferenciação celular e adaptabilidade.
Regulação em Procariontes e Eucariontes
Procariontes e eucariontes compartilham mecanismos regulatórios, como proteínas que se ligam ao DNA para modular a transcrição. No entanto, genomas eucarióticos são maiores e mais complexos, exigindo mais tipos de proteínas regulatórias e interações. A principal diferença é que o DNA eucariótico é compactado em nucleossomos, formando a cromatina, que é dinâmica e essencial na regulação gênica, enquanto o DNA procariótico não possui nucleossomos.
Bactérias, apesar de sua simplicidade, precisam regular a expressão de seus genes para serem eficientes nutricionalmente. Elas produzem enzimas para obter compostos do ambiente ou sintetizá-los apenas quando necessário, economizando energia e recursos. Sistemas regulatórios acoplam a expressão gênica a sensores que detectam a disponibilidade de nutrientes, como açúcares, garantindo que as enzimas sejam produzidas somente quando há substrato e não há opção mais eficiente (como glicose).
Base da Regulação Transcricional Procariótica
A transcrição regulada em procariontes requer duas interações DNA-proteína próximas ao início do gene. A primeira envolve o promotor, onde a RNA polimerase se liga para iniciar a transcrição. Cada gene precisa de um promotor para ser transcrito. A segunda interação envolve proteínas regulatórias (ativadores e repressores) que se ligam a segmentos de DNA próximos ao promotor. Na regulação positiva, a presença de uma proteína ativadora é necessária para a transcrição, ajudando a RNA polimerase a se ligar. Na regulação negativa, a ausência de uma proteína repressora ligada permite a transcrição, pois o repressor normalmente interfere na ligação ou movimento da RNA polimerase.
O Circuito Regulador lac: Um Primeiro Exame
O trabalho de Jacob e Monod nos anos 1950 revelou a regulação genética do metabolismo da lactose. Este sistema é examinado na presença e ausência de lactose. O metabolismo da lactose requer duas enzimas: uma permease (para transporte) e a β-galactosidase (para quebrar a lactose em glicose e galactose). As estruturas dessas proteínas são codificadas pelos genes Z e Y, respectivamente, adjacentes no genoma. Um terceiro gene, A, codifica a transacetilase, não essencial para o metabolismo da lactose. Z, Y e A são chamados genes estruturais. A regulação da produção de seu mRNA coordena a síntese das três enzimas, ou seja, são produzidas todas ou nenhuma.
Descoberta do Sistema lac de Controle Negativo
Para estudar a regulação gênica, são essenciais três elementos: um ensaio bioquímico para quantificar mRNA ou proteína, condições confiáveis que induzam diferenças nos níveis de expressão em um genótipo selvagem, e mutações que alterem esses níveis de expressão.
Repressão Catabólica do Operon lac: Controle Positivo
O sistema lac evoluiu para otimizar a eficiência energética bacteriana. Duas condições ambientais devem ser atendidas para a expressão das enzimas metabólicas da lactose: a lactose deve estar presente e a glicose não pode estar presente. É ineficiente produzir enzimas para lactose se não há substrato, e a glicose é uma fonte de energia preferencial. Mecanismos foram desenvolvidos para evitar a produção de enzimas de lactose quando glicose e lactose estão presentes. A repressão da transcrição dos genes do metabolismo da lactose na presença de glicose é um exemplo de repressão catabólica, um mecanismo que também afeta o metabolismo de outros açúcares.
Controle Duplo: Positivo e Negativo no Operon de Arabinose
A regulação procariótica da transcrição frequentemente combina controle positivo e negativo. O operon de arabinose é um exemplo onde uma única proteína de ligação ao DNA atua como repressor ou ativador. Os genes estruturais (araB, araA, araD) codificam enzimas para degradar arabinose e são transcritos como um único mRNA. A transcrição é ativada na região iniciadora (aral), que contém um sítio operador e um promotor. O gene araC, próximo, codifica uma proteína ativadora que, ligada à arabinose, ativa a transcrição do operon ara, possivelmente auxiliando a RNA polimerase. O sistema de repressão catabólica CAP-cAMP, que regula o operon lac, também regula o operon ara.
Vias Metabólicas e Operons
O controle coordenado de genes é generalizado em bactérias e bacteriófagos, operando principalmente via mecanismos de operon. Em muitas vias que produzem moléculas essenciais a partir de blocos inorgânicos, os genes que codificam enzimas são organizados em operons com mRNAs multigênicos. Há uma notável congruência entre a sequência dos genes do operon no cromossomo e a sequência de atuação de seus produtos na via metabólica, como ilustrado pelo operon de triptofano em E. coli. Embora existam variações específicas, os temas gerais da regulação gênica procariótica são similares.
A regulação gênica eucariótica compartilha características com a procariótica, como proteínas regulatórias que se ligam a sequências específicas do DNA para controlar a transcrição. No entanto, é muito mais complexa, com dezenas de milhares de genes e padrões de expressão altamente variados. A herança epigenética, que envolve a transmissão da estrutura da cromatina entre gerações celulares, é uma diferença fundamental, onde a estrutura da cromatina pode mudar e influenciar a expressão gênica, sendo fielmente copiada durante a replicação do DNA.
Visão Geral da Complexidade Eucariótica
Eucariontes possuem tipicamente dezenas de milhares de genes, ordens de magnitude a mais que procariontes. Os padrões de expressão gênica eucariótica são extraordinariamente complexos, com grande variação no momento e na quantidade de transcritos produzidos (ex: um gene ativado apenas no início do desenvolvimento ou durante uma infecção viral). A maioria dos genes em uma célula eucariótica está 'desligada' em qualquer momento. Essas considerações destacam a sofisticação necessária na regulação gênica eucariótica.
Elementos Regulatórios de Ação cis
Para que a RNA polimerase II transcreva DNA em RNA na velocidade máxima, vários elementos regulatórios de ação cis devem atuar cooperativamente. Podemos distinguir três classes de elementos com base em suas localizações relativas: promotores, elementos proximais ao promotor e elementos independentes da distância (acentuadores ou silenciadores). Geralmente, um acentuador ou silenciador atua apenas em um ou alguns tipos de células em um eucarionte multicelular. Esses elementos servem como sítios de ligação para diferentes proteínas regulatórias de ação trans.
O Promotor e Elementos Proximais ao Promotor
A ligação da RNA polimerase ao promotor não é suficiente para uma transcrição eficiente. A transcrição é acentuada quando fatores de transcrição se ligam a elementos proximais ao promotor (também chamados de elementos antecedentes ao promotor ou UPEs), localizados a 100-200 pares de bases do sítio de início da transcrição. Exemplos incluem a caixa CCAAT e um segmento rico em GC. Os fatores de transcrição que se ligam a esses UPEs são expressos constitutivamente, em todas as células e em todos os momentos, ativando a transcrição em diversos tipos celulares. Mutações nesses sítios podem ter um efeito marcante na transcrição, sublinhando sua importância.
O Papel Crucial da Cromatina
Inicialmente, muitos cientistas viam a regulação eucariótica como uma versão mais complexa da procariótica, com mais proteínas reguladoras e elementos de ação cis. No entanto, essa visão mudou drasticamente com a compreensão do efeito da organização do DNA genômico em eucariontes. Diferente do DNA 'nu' dos procariontes, os cromossomos eucarióticos são organizados em cromatina (DNA e histonas). A unidade básica é o nucleossomo (150 pb de DNA enrolado em um octâmero de histonas H2A, H2B, H3, H4). Nucleossomos podem formar estruturas de ordem superior que condensam ainda mais o DNA. Cromatina altamente condensada é heterocromatina; menos condensada é eucromatina. A condensação da cromatina muda durante o ciclo celular, influenciando a acessibilidade do DNA para a transcrição.
Remodelagem da Cromatina e Silenciamento Gênico
Fenômenos como imprinting, inativação do X e variegação do efeito de posição demonstram que a expressão gênica pode ser silenciada sem alterar a sequência de DNA. Isso indica que a organização do nucleossomo é dinâmica, respondendo a mudanças metabólicas ou programas de desenvolvimento, contribuindo para ligar e desligar genes. A compreensão da estrutura da cromatina e seu efeito na expressão gênica está em constante evolução. Embora haja uma distinção clara entre eucromatina e heterocromatina constitutiva, o estado exato da cromatina para o silenciamento gênico não é totalmente claro. Provavelmente existem muitos estados intermediários de condensação. O termo heterocromatina facultativa descreve regiões eucromáticas que podem assumir uma estrutura mais condensada. Usamos 'cromatina silenciosa' para descrever essas regiões dinâmicas de eucromatina no estado condensado que levam ao silenciamento genético.
O Gene de β-Interferon Revisitado
Anteriormente, o promotor de β-interferon era mostrado sem nucleossomos para focar nas interações cooperativas entre fatores de transcrição. Hoje, sabemos que o acentuassomo é livre de nucleossomos, mas cercado por dois nucleossomos (nuc I e nuc II), sendo nuc II estrategicamente posicionado no TATA box e no sítio de início da transcrição. Fatores de transcrição interagem para formar um sítio de ligação de alta afinidade para o coativador CBP. A ligação de GCN5, que possui atividade de histona acetilase, precede a ligação de CBP, acetilando as histonas em nuc II. Essa acetilação recruta CBP, a holoenzima da RNA polimerase II e o complexo de remodelamento da cromatina SWI-SNF, que reposiciona o nucleossomo a 37 pb do TATA box, tornando-o acessível à proteína de ligação a TATA e permitindo o início da transcrição.
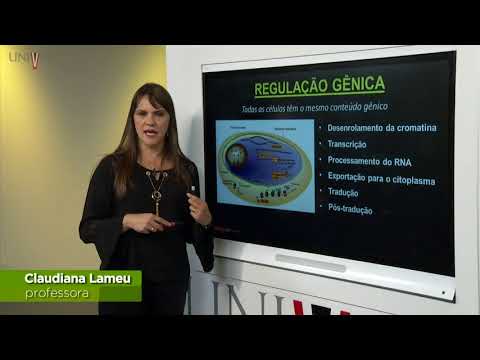
A expressão gênica pode ser regulada em diversas etapas, desde o DNA até a proteína final, garantindo um controle preciso sobre a produção de produtos gênicos.